


Références scientifiques Protéine végétale
PROTÉINE VÉGÉTALE
- Pourquoi les protéines sont-elles essentielles ?
- Le muscle squelettique : le cœur du métabolisme des protéines
2.1- Le plus grand réservoir d'acides aminés
2.2- Les acides aminés comme signaux cellulaires
2.3- Les protéines musculaires comme base fonctionnelle du tissu
3.1- Fonction métabolique : Le régulateur majeur du métabolisme glucidique
- A) Lipotoxicité intramusculaire : mécanisme clé de la insulinorésistance
- B) Le paradoxe de l'athlète : La dynamique plutôt que la quantité
- C) L'exercice physique : un puissant restaurateur de la sensibilité à l'insuline et du métabolisme musculaire
3.2- Fonction endocrine : Le dialogue des myokines6
- A) Régulation locale : adaptation et remodelage du muscle
- B) Régulation systémique : un dialogue permanent avec les autres organes
3.3- Modulation de la réponse au stress
3.4- Le muscle squelettique comme déterminant majeur de la longévité
4.1- La physiologie de l'hypertrophie musculaire
4.1.1- La balance protéique musculaire
4.1.2- Le stimulus mécanique et la mécanotransduction
4.1.3- La nécessité d'un surplus énergétique ciblé
5.1- L'ajustement des apports quotidiens : une approche individualisée
5.2- Répartition et timing : du débit quotidien à l'optimisation per-repas
7.1. Caractéristiques des matrices protéiques : sources animales versus végétales
7.2. Indicateurs standardisés d'évaluation de la qualité protéique
L'Indice Chimique (Chemical score)
L'indice PDCAAS (Protein Digestibility-Corrected Amino Acid Score)
L'indice DIAAS (Digestible Indispensable Amino Acid Score)
7.3. Stratégies d'optimisation des formulations végétales
1. Pourquoi les protéines sont-elles essentielles ?
L’apport quotidien en protéines est une nécessité vitale absolue pour trois raisons physiologiques majeures :
- La principale source d'azote de l'organisme : Contrairement aux glucides et aux lipides qui ne sont composés que de carbone, d'hydrogène et d'oxygène, les protéines constituent pratiquement la seule source d'azote nutritionnel de l'organisme, en fournissant l'azote organique. Cet azote est indispensable à la vie car il constitue le dénominateur commun indispensable à la genèse de toutes les protéines endogènes, lesquelles se différencient en plusieurs classes de macromolécules assurant desrôles physiologiques distincts et vitaux :
- Structural : Il permet la synthèse des protéines structurales (comme le collagène, l'élastine et la kératine) qui constituent la matrice des muscles, de la peau, des cheveux, des ongles et le réseau de soutien des tissus conjonctifs (1).
- Enzymatique : L'azote est requis pour assembler les enzymes, des protéines spécialisées qui catalysent quasiment toutes les réactions biochimiques de l'organisme, incluant la digestion et le métabolisme général (2).
- Transporteur : Il sous-tend la formation des transporteurs membranaires, de l'hémoglobine pour l’oxygène, et de l'albumine pour véhiculer les hormones, les acides gras et les médicaments dans la circulation (3,4).
- Signalisation : Cet azote permet la synthèse des hormones peptidiques (insuline, hormone de croissance GH...) et de leurs récepteurs cellulaires pour coordonner la communication métabolique (5).
- Immunité : Il est indispensable à la production des anticorps (immunoglobulines), les glycoprotéines effectrices du système immunitaire (6).
- Contraction musculaire : L'apport azoté fournit les acides aminés nécessaires à l'assemblage des protéines contractiles majeures, l'actine et la myosine, qui génèrent la force et le mouvement (7).
- Réserve et régulation : Il participe à la synthèse des facteurs de coagulation, des protéines tampons maintenant le pH physiologique, et des protéines plasmatiques gérant la pression oncotique et l'équilibre osmotique (4).
- Réserve énergétique de dernier recours : en cas de déficit énergétique sévère, lorsque les réserves glucidiques et lipidiques sont insuffisantes, les protéines corporelles sont dégradées en acides aminés. Après désamination, le squelette carboné de ces acides aminés peut alimenter la néoglucogenèse ou entrer dans le cycle de Krebs afin de contribuer à la production d'énergie (8).
- Leturnoverprotéique : Le corps humain ne travaille pas avec des structures figées. Il dégrade et resynthétise en permanence ses propres protéines (environ 300 à 400 g par jour chez l'adulte, touchant les muscles, les enzymes et les immunoglobulines). Bien que le corps recycle une grande partie de ces acides aminés, une fraction est irréversiblement oxydée et perdue chaque jour (via l'urée, la sueur, la desquamation). Ces pertes incompressibles doivent obligatoirement être compensées par l'alimentation (6).
- L'absence de stock de réserve : Contrairement à l'énergie que l'on stocke sous forme de glycogène (glucides) ou de tissu adipeux (lipides), le corps n'a aucune réserve de protéines à but de stockage. Chaque protéine dans le corps a une fonction active (contractile, enzymatique, immunitaire). En situation d'apport insuffisant en protéines, l'organisme augmente le catabolisme de ses protéines corporelles, principalement au niveau de la masse musculaire squelettique, afin de fournir les acides aminés nécessaires au maintien des fonctions vitales et au bon fonctionnement d'organes essentiels tels que le cœur et le cerveau (9).
2. Le muscle squelettique : le cœur du métabolisme des protéines
Le muscle squelettique ne doit plus être envisagé comme un simple tissu de soutien ou un moteur mécanique. Représentant le plus grand réservoir d'acides aminés de l'organisme, il constitue le site majeur de la régulation protéique et du métabolisme systémique. Il entretient une relation de dépendance absolue avec les protéines alimentaires à travers trois mécanismes clés :
2.1- Le plus grand réservoir d'acides aminés
Le muscle squelettique constitue le plus grand organe de l’organisme et représente environ 40 % de la masse corporelle globale(10). Le maintien de sa masse et de sa fonction dépend directement de la disponibilité en acides aminés issus de l'alimentation. En effet, le tissu musculaire est soumis à un renouvellement protéique permanent (protein turnover), résultant du rapport dynamique entre la synthèse protéique musculaire (MyoPS, Myofibrillar Protein Synthesis) et la dégradation protéique musculaire (MPB, Muscle Protein Breakdown, MPB) (11). Lorsque la synthèse dépasse la dégradation, la masse musculaire est préservée ou augmente ; à l'inverse, lorsque la dégradation prédomine, une perte de masse s'installe. Le maintien d'une balance protéique musculaire positive nécessite ainsi un apport quotidien et régulier en protéines alimentaires de haute valeur biologique, capables de fournir une quantité suffisante d'acides aminés essentiels.
2.2- Les acides aminés comme signaux cellulaires
Au-delà de leur rôle de simples blocs de construction structurelle, les acides aminés issus de l’alimentation participent directement à la régulation du métabolisme musculaire. Ils agissent comme de véritables molécules de signalisation cellulaires capables de moduler la synthèse protéique. En particulier, la leucine joue un rôle déclencheur fondamental en activant la voie de signalisation mTORC1 (Mechanistic Target of Rapamycin Complex 1), le principal régulateur de l'initiation de la traduction et de l'anabolisme protéique musculaire(12–14).
2.3- Les protéines musculaires comme base fonctionnelle du tissu
Au sein du muscle squelettique, les protéines ne jouent pas uniquement un rôle structurel, mais constituent également l’ensemble des éléments fonctionnels du tissu. Elles assurent la fonction contractile à travers les myofilaments d'actine et de myosine, dont le glissement relatif génère la force et le mouvement. Cette dynamique est étroitement contrôlée par la troponine, un complexe protéique régulateur déclenché par le calcium qui déplace la tropomyosine pour démasquer les sites de liaison de l'actine. À cette machinerie s'ajoute la titine, une protéine géante s'étendant à travers le sarcomère qui agit comme un ressort moléculaire, assurant l'élasticité passive, le recentrage des filaments épais et la mécanotransduction des contraintes physiques. Le renouvellement constant de cet édifice est indispensable au maintien de l’intégrité des fibres musculaires et à la réparation des micro-lésions induites par le stress mécanique (7). Par ailleurs, la cellule musculaire abrite de nombreuses protéines indispensables à son fonctionnement, notamment un vaste réseau d'enzymes métaboliques impliquées dans la production d’énergie (glycolyse, 𝛃-oxydation et cycle de Krebs) ainsi que des protéines régulatrices garantissant l'homéostasie cellulaire (2).
3. Les multiples fonctions du muscle squelettique: bien plus qu'un moteur du mouvement
Longtemps réduit à son seul rôle locomoteur et mécanique, le muscle squelettique est aujourd'hui reconnu comme un acteur majeur du métabolisme énergétique et un véritable organe endocrine, capable de communiquer avec de nombreux tissus et organes, fonctions vitales qui dépassent largement le cadre de l'exercice physique (6,15,16). Ainsi, le muscle squelettique ne constitue pas seulement un effecteur mécanique de l'exercice physique, mais un organe essentiel au maintien de l'homéostasie de l'organisme, dont l'intégrité influence directement la santé métabolique, les capacités fonctionnelles et le vieillissement en bonne santé.
3.1- Fonction métabolique : Le régulateur majeur du métabolisme glucidique
Le muscle squelettique joue un rôle central dans le maintien de l'homéostasie glucidique. Il représente le principal site de captation du glucose stimulé par l'insuline, assurant environ 70 à 80 % de l'utilisation du glucose après un repas, et constitue la principale réserve de glycogène de l'organisme (10,17).
La préservation de la masse musculaire et de sa qualité fonctionnelle est un pilier de la santé métabolique. Une diminution de la masse musculaire ou une altération de sa capacité métabolique réduit mécaniquement la surface de captation du glucose, initiant un cercle vicieux qui favorise l'insulinorésistance et augmente le risque de développer un diabète de type 2 (17–20). À l'inverse, le développement de la masse musculaire, notamment grâce à l'entraînement en résistance, est associée à une meilleure captation du glucose, de la sensibilité à l'insuline et du contrôle glycémique (21). Lorsque cette fonction métabolique est altérée, le muscle perd progressivement sa capacité à répondre correctement à l'insuline. Cette insulinorésistance musculaire constitue l'une des premières anomalies métaboliques observées au cours du développement du diabète de type 2 (21).
Lipotoxicité intramusculaire : mécanisme clé de la insulinorésistance
Dans un contexte de sédentarité, d'excès énergétique chronique ou d'obésité, l'excès d'acides gras circulants dépasse les capacités de stockage du tissu adipeux. Ces lipides s'accumulent alors de manière ectopique dans le muscle sous forme de lipides intramyocellulaires (LIMC)(22).
Cette accumulation ne pose pas seulement un problème quantitatif, mais qualitatif. Les perturbations métaboliques apparaissent principalement lorsque ces lipides sont convertis en intermédiaires bioactifs, notamment les diacylglycérols (DAG) et les céramides, qui interfèrent avec la signalisation de l'insuline (22).
- Les diacylglycérols (DAG) : Ils activent des isoformes spécifiques de la protéine kinase C (notamment la PKC-θ). Cette activation induit une phosphorylation anormale (sur résidus sérine) du substrat du récepteur de l'insuline-1 (IRS-1), bloquant ainsi la cascade de signalisation intracellulaire de l'insuline (23).
- Les céramides : Ces molécules altèrent directement l'activation de la protéine kinase B (Akt/PKB), une enzyme indispensable à la survie de la voie de signalisation.
Le résultat final de cette lipotoxicité est une diminution de la translocation des transporteurs GLUT4 vers la membrane plasmique, limitant l'entrée du glucose dans la cellule musculaire et aggravant progressivement l'insulinorésistance .
Le paradoxe de l'athlète : La dynamique plutôt que la quantité
L'association entre accumulation de lipides intramusculaires et insulinorésistance est toutefois remise en question par le "paradoxe de l'athlète". Les sportifs d'endurance présentent des concentrations de lipides intramyocellulaires comparables, voire supérieures, à celles observées chez des personnes atteintes de diabète de type 2, tout en conservant une excellente sensibilité à l'insuline (24). Les recherches en biologie cellulaire ont permis d'identifier trois mécanismes expliquant cette tolérance métabolique :
Cette observation montre que ce n'est pas la quantité de lipides intramusculaires qui détermine la sensibilité à l'insuline, mais leur devenir métabolique. Chez les sujets entraînés, les acides gras sont rapidement estérifiés sous forme de triacylglycérols (TAG), une forme de stockage métaboliquement inerte, puis organisés au sein de gouttelettes (25). Cette organisation favorise le transfert direct des acides gras vers les mitochondries où ils sont rapidement oxydés pendant l'effort (26).
La différence fondamentale réside donc dans le flux d'utilisation de ces graisses. Chez le sujet sédentaire, le stock de lipides est quasi-statique. Chez l'athlète, ces lipides représentent une source d'énergie dynamique : ils sont rapidement stockés puis massivement oxydés lors de l'effort physique (26). Cette différence reflète la flexibilité métabolique du muscle, c'est-à-dire sa capacité à alterner efficacement entre l'utilisation des glucides et des lipides selon les besoins énergétiques (27).
C) L'exercice physique : un puissant restaurateur de la sensibilité à l'insuline et du métabolisme musculaire
L'exercice physique constitue aujourd'hui l'intervention la plus efficace pour améliorer la sensibilité à l'insuline. Ses effets reposent sur deux mécanismes complémentaires.
D'une part, l'entraînement chronique augmente la densité mitochondriale, améliore la capacité oxydative du muscle, diminue l'accumulation de DAG et de céramides et restaure progressivement la signalisation insulinique(28).
D'autre part, la contraction musculaire active une voie totalement indépendante de l'insuline. L'augmentation du rapport AMP/ATP entraîne l'activation de la protéine kinase activée par l'AMP (AMPK), véritable capteur énergétique cellulaire. Une fois activée, l'AMPK stimule directement la translocation des transporteurs GLUT4 vers la membrane plasmique, permettant au glucose de pénétrer dans la cellule même lorsque la signalisation de l'insuline est altérée (19,29). Parallèlement, l'AMPK active le coactivateur transcriptionnel PGC-1α, stimulant la biogenèse mitochondriale et la β-oxydation des acides gras, ce qui contribue à réduire la lipotoxicité et à restaurer la flexibilité métabolique (30).
Chez les personnes âgées, les exercices d'endurance comme le renforcement musculaire améliorent la sensibilité à l'insuline, préservent les capacités oxydatives du muscle et participent ainsi à la prévention des maladies cardiométaboliques (31).
3.2- Fonction endocrine : Le dialogue des myokines
Aujourd'hui, le muscle squelettique est reconnu comme un véritable organe sécrétoire endocrine. En réponse à la contraction induite par l'exercice, il synthétise et libère des centaines de peptides et protéines de signalisation, appelés myokines, qui exercent des effets autocrines, paracrines et endocriniens. À ce jour, plus de 650 myokines ont été répertoriées, établissant une base conceptuelle majeure pour comprendre la communication bidirectionnelle entre le tissu musculaire et les autres systèmes de l'organisme (32,33).
Régulation locale : adaptation et remodelage du muscle
Les myokines exercent d'abord des effets autocrines et paracrines, indispensables à l'adaptation du muscle à l'exercice. Plusieurs d'entre elles, notamment LIF, IL-4, IL-7, IL-15, la muscline et l'IL-6, stimulent la prolifération et la différenciation des cellules satellites, favorisent l'activation de la voie mTORC1 et participent au remodelage ainsi qu'à l'hypertrophie musculaire. À l'inverse, la myostatine agit comme un puissant frein de la croissance musculaire, un effet en partie contrebalancé par la décorine, dont l'expression augmente après l'exercice (32,33).
Ces myokines participent également au maintien du métabolisme énergétique de la fibre musculaire. L'IL-6 produite localement active l'AMPK, augmentant la translocation des transporteurs GLUT4, la captation du glucose et l'oxydation des acides gras. Le BDNF musculaire, bien que peu relargué dans la circulation, agit également localement en stimulant les voies oxydatives via l'AMPK, tandis que FSTL1 contribue au maintien de la fonction endothéliale et favorise la revascularisation du muscle après une ischémie ou une lésion (32,33).
Régulation systémique : un dialogue permanent avec les autres organes
Au-delà du muscle, les myokines orchestrent une véritable communication inter-organes permettant de coordonner les réponses métaboliques induites par l'exercice.
Au niveau du métabolisme énergétique, l'IL-6 augmente la lipolyse du tissu adipeux, stimule la production hépatique de glucose pendant l'exercice afin de maintenir la glycémie et favorise indirectement la sécrétion de GLP-1 par les cellules L intestinales, améliorant ainsi la réponse insulinique postprandiale. L'irisine, la météorine-like (METRNL) ainsi que l'IL-6 participent également au brunissement du tissu adipeuxblanc, augmentant sa capacité oxydative et sa dépense énergétique (32,34,35).
Le muscle exerce également une influence majeure sur le système nerveux central. Des myokines telles que l'irisine et la cathepsine B stimulent la production cérébrale de BDNF, favorisant la neurogenèse hippocampique, la plasticité synaptique et certaines fonctions cognitives. Plus récemment, plusieurs travaux suggèrent également que certaines myokines participent à larégulation de l'appétit, de la réponse au stress et du comportement alimentaire, bien que ces mécanismes restent encore activement étudiés (36,37).
Les interactions entre le muscle et l'os illustrent également cette communication bidirectionnelle. Des facteurs tels que IGF-1, FGF-2, IL-15 et la décorine participent au remodelage osseux en stimulant l'ostéogenèse, tandis que l'activité musculaire représente le principal stimulus mécanique indispensable au maintien de la densité minérale osseuse (38,39).
Enfin, l'exercice induit une augmentation transitoire de l'IL-6 musculaire qui, contrairement à l'IL-6 produite lors d'une inflammation chronique, exerce principalement un effet anti-inflammatoire. Cette élévation stimule la production d'IL-1ra et d'IL-10 tout en inhibant la synthèse du TNF-α, contribuant ainsi à réduire l'inflammation chronique de bas grade associée au vieillissement et aux maladies métaboliques (40,41).
Comme toutes les protéines de l'organisme, les myokines sont synthétisées à partir des acides aminés disponibles dans la fibre musculaire. Ainsi, un apport en protéines alimentaires adéquat et régulier (particulièrement riche en acides aminés essentiels) conditionne directement la capacité de synthèse et le maintien de la fonction endocrine globale de votre masse musculaire squelettique (6,42).
3.3- Modulation de la réponse au stress
Le muscle squelettique entretient une relation étroite avec l'axe hypothalamo-hypophyso-surrénalien (HHS), principal système de régulation de la réponse au stress. Lors d'un stress aigu, l'augmentation transitoire du cortisol constitue une réponse physiologique normale permettant de mobiliser rapidement les substrats énergétiques nécessaires à l'adaptation de l'organisme. En revanche, lorsque cette activation devient chronique, l'exposition prolongée au cortisol exerce des effets délétères sur le tissu musculaire (43,44).
Le cortisol inhibe la voie anabolique PI3K/Akt/mTORC1, réduit la synthèse des protéines musculaires et stimule simultanément leur dégradation en activant les systèmes ubiquitine-protéasome et autophagie-lysosome. Il favorise notamment l'expression des ubiquitine-ligases MuRF1 et Atrogin-1 (MAFbx), deux régulateurs majeurs de l'atrophie musculaire (Bodine et al., 2001 ; Schakman et al., 2013). À long terme, cette réponse catabolique contribue à la perte de masse musculaire, à la diminution de la force et à l'apparition d'une résistance anabolique(6,45).
Cette altération du tissu musculaire ne se limite pas à une perte de fonction mécanique. La diminution de la masse et de l’activité musculaire s’accompagne également d’une réduction de la capacité de captation du glucose, d’une perturbation de la fonction endocrine du muscle et d’une modification du profil de sécrétion des myokines impliquées dans la régulation du métabolisme énergétique, de l’inflammation et de la communication inter-organes. Le muscle devient ainsi non seulement une cible du stress chronique, mais également un élément participant au maintien du déséquilibre métabolique systémique (6,45).
En revanche, l’exercice physique régulier représente un puissant régulateur de l’interaction entre le muscle et l’axe HHS, permettant de limiter les effets délétères du stress chronique (46,47). Au niveau périphérique, il favorise le maintien de la masse musculaire, améliore la sensibilité aux signaux anaboliques et contribue à une régulation plus efficace de la réponse glucocorticoïde. Au niveau central, le dialogue myokinique décrit précédemment, notamment à travers l’axe irisine/BDNF, participe à la plasticité neuronale et au maintien de la fonction hippocampique. Cette structure joue un rôle essentiel dans le rétrocontrôle négatif de l’axe HHS, favorisant une résolution plus rapide de la réponse au stress et un retour vers l’homéostasie (48,49). Cette régulation neuroendocrine à long terme est complétée par des adaptations plus immédiates des circuits neurochimiques impliqués dans l’humeur et la gestion du stress. L’exercice influence notamment les systèmes de signalisation associés aux endorphines, à la sérotonine, à la dopamine et au GABA, contribuant ainsi à ses effets anxiolytiques et à l’amélioration du bien-être psychologique (50,51).
Ainsi, par sa capacité à communiquer avec les autres organes via les myokines et à moduler les voies neuroendocriniennes, le muscle squelettique apparaît comme un véritable régulateur de la réponse au stress, intégrant les dimensions de l’adaptation physique, de l’homéostasie métabolique et de la santé cérébrale.
3.4- Le muscle squelettique comme déterminant majeur de la longévité
L'ensemble de ces fonctions mécaniques, métaboliques et endocrines explique pourquoi le muscle squelettique est aujourd'hui considéré comme l'un des principaux déterminants du vieillissement en bonne santé (healthy ageing). Son rôle dépasse largement la locomotion : il participe au maintien de l'homéostasie glucidique et lipidique, régule l'inflammation systémique, assure une communication permanente avec de nombreux organes et constitue la principale réserve protéique mobilisable lors d'un stress physiologique ou d'une maladie (6,45,52).
À l'inverse, la diminution progressive de la masse et surtout de la qualité musculaires favorise l'installation d'une insulinorésistance, d'une dysfonction mitochondriale, d'une perte de flexibilité métabolique et d'un état inflammatoire chronique de bas grade (inflammaging), mécanismes impliqués dans le développement des maladies cardiovasculaires, du diabète de type 2, de plusieurs maladies neurodégénératives et de la fragilité liée à l'âge (27,53,54).
Ainsi, le muscle squelettique ne doit plus être considéré comme un simple marqueur de bonne santé, mais comme un véritable acteur causal de la longévité. En préservant simultanément les capacités fonctionnelles, l'équilibre métabolique et la communication endocrine entre les organes, il contribue directement à prolonger l'espérance de vie en bonne santé (healthspan). À ce titre, l'exercice physique régulier, en particulier l'entraînement en résistance associé à un apport protéique adéquat, représente aujourd'hui l'une des interventions les plus efficaces pour ralentir le déclin physiologique lié à l'âge et prévenir l'apparition de nombreuses maladies chroniques(55,56).
4. Applications cliniques et performance sportive
4.1- La physiologie de l'hypertrophie musculaire
Le maintien des fonctions du muscle squelettique repose sur l'interaction étroite entre l'activité physique et la nutrition. Les recommandations de l'Organisation mondiale de la Santé préconisent, chez les adultes et les personnes âgées, la pratique d'activités de renforcement musculaire sollicitant les principaux groupes musculaires au moins deux jours par semaine, en complément des activités d'endurance (57).
L'exercice physique constitue le principal stimulus de l'adaptation musculaire en activant les voies de signalisation impliquées dans la synthèse protéique et le remodelage tissulaire. Cependant, cette réponse adaptative ne peut être pleinement exprimée qu'en présence d'un apport suffisant en protéines et en acides aminés essentiels, qui fournissent les substrats nécessaires à la synthèse de nouvelles protéines musculaires (58,59). Ainsi, l’exercice agit comme stimulus principal, tandis que l’apport protéique conditionne l’efficacité de la réponse de synthèse protéique musculaire.
4.1.1- La balance protéique musculaire
L’augmentation de la masse musculaire (hypertrophie) à long terme résulte d’un processus adaptatif qui obéit à une équation thermodynamique simple : l'obtention répétée d'un bilan protéique net positif. Ce bilan net est déterminé par la différence constante entre le taux de synthèse protéique musculaire (MPS)(anabolisme, construction et récupération) et le taux de dégradation protéique musculaire (MPB) (catabolisme, perte et usure). Pour qu'il y ait hypertrophie, la MPS doit dépasser la MPB de manière chronique et répétée grâce à la synergie fine entre l’entraînement de force et la nutrition (60).
4.1.2- Le stimulus mécanique et la mécanotransduction
L'exercice de résistance (musculation) est le stimulus de base indispensable pour déclencher l'anabolisme. La production d’une tension mécanique suffisante au niveau de la fibre musculaire active des récepteurs membranaires par un phénomène de mécanotransduction. Ce signal physique est traduit en signaux chimiques intracellulaires, activant les voies de signalisation anabolique post-entraînement et augmentant la MPS durant toute la phase de récupération (61) .
4.1.3- La nécessité d'un surplus énergétique ciblé
La synthèse de nouvelles protéines myofibrillaires (actine et myosine) est l'un des processus cellulaires les plus coûteux en énergie (ATP) de l'organisme. Il est estimé que le simple coût énergétique quotidien du renouvellement protéique de base (hors hypertrophie) s'élève à environ 4,3 kcal/kg/jour, ce qui représente environ 20 % du métabolisme basal (soit environ 300 kcal/jour pour un individu de 70 kg) (62,63).
Cette estimation est minimale car elle ne prend en compte que la synthèse et la dégradation de base, sans inclure le coût énergétique des modifications post-traductionnelles et des multiples réactions régulatrices qui optimisent la synthèse, ce qui suggère un coût réel encore plus élevé en phase de croissance tissulaire active.
En raison de ce coût métabolique élevé, les acides aminés ne peuvent pas soutenir durablement la formation de nouvelles fibres musculaires si l’énergie globale disponible est insuffisante. En cas de restriction calorique sévère, la MPS diminue et la MPB augmente, limitant drastiquement les gains de masse musculaire malgré un apport protéique correct.
Pour maximiser l'hypertrophie, il est recommandé d'appliquer un surplus énergétique modéré et progressif de 200 à 400 kcal/jour au-dessus des besoins de maintenance. L'objectif est d'assurer une prise de poids contrôlée d'environ 0,45 kg par semaine, principalement sous forme de tissu musculaire, tout en évitant l'adiposité et la désensibilisation à l'insuline liée à une prise de gras excessive (64,65). Ce surplus calorique doit être ajusté et évité lors des jours de repos passif sans stimulus d'entraînement, sous peine de voir ces calories excédentaires stockées préférentiellement sous forme de tissu adipeux.
5. Besoins et apports recommandés de protéines :
Toute discussion relative aux besoins en protéines alimentaires repose sur une définition et une distinction claires entre besoin protéique et apport protéique recommandé.
- Le besoin protéique : C'est l'apport quotidien minimal en protéines nécessaire pour satisfaire les besoins métaboliques de l'organisme, notamment le maintien de sa composition corporelle (66). Il repose principalement sur des mesures du métabolisme protéique à l'échelle de l'organisme entier (67).
- L'apport protéique recommandé : Il s'agit des stratégies protéiques visant à optimiser la performance des athlètes en facilitant l'adaptation à l'entraînement et/ou en accélérant la récupération (68). Il repose principalement sur des mesures du métabolisme musculaire spécifiques aux tissus (principalement les muscles squelettiques).
Ces exigences nutritionnelles recommandées ne sont pas universelles. Elles varient d'abord selon l’âge (en raison du vieillissement de l'organisme), puis selon le mode de vie : le type d'effort (endurance ou résistance), le niveau d'activité physique (loisir ou athlète), et les objectifs de chacun (maintain, prise de muscle ou perte de gras). Pour s'adapter à chaque profil, cet apport se calcule en grammes de protéines par kilo de poids de corps et par jour (g/kg/j).
En nutrition sportive, les besoins ne s’envisagent jamais de manière binaire ou absolue, mais plutôt sous forme de continuums et de zones d'optimisation adaptées au métabolisme de chaque individu. La recherche montre de manière consensuelle que les gains de force, la récupération et le maintien de la masse maigre dépendent d'une synergie fine entre le stimulus de l'exercice et un apport protéique correctement calibré.
5.1- L'ajustement des apports quotidiens : une approche individualisée
Pour la majorité des adultes actifs, la science met en évidence une zone d'efficience optimale située entre 1,2 et 2,2 g/kg/jour. C'est dans cette fourchette que la réponse anabolique et adaptative est la plus rentable pour l'organisme.
Au-delà de ces valeurs, on observe un effet de rendement décroissant : des apports très élevés (supérieurs à 2,5 g/kg/jour) n'entraînent généralement pas d'adaptations musculaires ou de performances supplémentaires mesurables (plafond adaptatif). De plus, l'excès peut indirectement impacter la performance globale : les protéines étant particulièrement rassasiantes, une consommation disproportionnée peut réduire l'appétit pour les autres nutriments essentiels, notamment les glucides. Cela risque de diminuer les réserves de glycogène indispensables pour s'entraîner intensément.
Les besoins quotidiens doivent donc naviguer de manière fluide et se structurer précisément selon le profil, l'activité et les objectifs.
Chez l'adulte jeune (< 65 ans), l'individualisation des apports repose sur la nature de la charge mécanique et les objectifs corporels. Pour la population sédentaire, un apport de 0,83 à 1,2 g/kg/jour couvre le renouvellement cellulaire de base (1,69,70).
Chez les pratiquants de force, les besoins fluctuent selon l'expérience et le contexte énergétique. Les débutants bénéficient d'une sensibilité anabolique élevée et prolongée (Damas et al., 2015), où un apport quotidien de 1,6 à 1,8 g/kg/jour soutient les adaptations initiales, le plateau d'hypertrophie étant observé dès 1,62 g/kg/jour(56). Chez les pratiquants intermédiaires et avancés, les apports se maintiennent dans cette même fourchette de 1,6 à 2,2 g/kg/jour, la borne haute devenant indispensable en présence de volumes d'entraînement élevés ou d'un léger déficit calorique (14,56). En période de restriction énergétique stricte ("sèche"), ces recommandations peuvent monter temporairement à 2,2-2,6 g/kg/jour afin de préserver la masse maigre du catabolisme (Hector & Phillips, 2018).
En entraînement de force, l'apport protéique quotidien total constitue le principal déterminant nutritionnel de l'hypertrophie. La méta-analyse de Morton et al. (2018) (71) établit que le bénéfice maximal moyen est atteint autour de 1,6 g/kg/jour, point où apparaît un “plafond anabolique” lié à la capacité finie de la synthèse protéique musculaire (MPS) et à la saturation de la voie mTORC1, au-delà duquel l'excès d'acides aminés est orienté vers l'oxydation métabolique. Toutefois, l'intervalle de confiance à 95 % s'étendant jusqu'à 2,2 g/kg/jour pour couvrir la variabilité interindividuelle, le ISSN (International Society of Sports Nutrition Position Stand) recommande une fourchette globale de 1,4 à 2,0 g/kg/jour (14,72) . Le statut d'entraînement agit ici comme un modérateur majeur : si les débutants bénéficient d'une sensibilité anabolique accrue permettant de maximiser pleinement leurs gains avec des apports de 1,6 à 1,8 g/kg/jour(couvrant largement le seuil d'efficacité initiale), les pratiquants avancés développent une “résistance adaptative” qui nécessite d'élever les apports entre 1,8 et 2,2 g/kg/jour(14,73), le haut de cette fourchette devenant particulièrement pertinent lors de cycles à haut volume, de phases intensives d'hypertrophie ou de restriction calorique pour préserver la masse maigre du catabolisme (74).
En endurance, le rôle des protéines va bien au-delà du maintien de la masse musculaire, englobant la réparation des micro-lésions structurales, la modulation de l'inflammation et la biogenèse mitochondriale (75). Si les débutants et pratiquants de loisir requièrent environ 1,4 g/kg/jour (76–78), les besoins s'élèvent chez les athlètes intermédiaires et entraînés à 1,6 g/kg/jour les jours d'entraînement (75,79,80). Chez les professionnels soumis à des sollicitations extrêmes, les besoins quotidiens oscillent entre 1,8 et 2,0 g/kg/jour, pouvant monter jusqu'à 2,1-2,6 g/kg/jour lors des 24 heures suivant un effort particulièrement éprouvant (75,81).
L'avancée en âge s'accompagne d'un phénomène de résistance anabolique, caractérisé par une sensibilité musculaire émoussée aux acides aminés et à la stimulation mécanique (82) . Chez l'athlète Master (> 35 ans), ce déclin d'efficacité métabolique exige une structuration rigoureuse. En force, une cible de 1,6 g/kg/jour constitue un repère pragmatique de base (83), pouvant s'élever entre 1,6 et 2,0 g/kg/jour pour les charges d'entraînement importantes, et monter à 2,0-2,4 g/kg/jour lors de périodes de restriction calorique, de blessure ou de récupération dégradée (75,84). En endurance, les athlètes Masters présentent une cinétique de récupération plus lente de leurs protéines contractiles après un exercice comportant des dommages excentriques (85). Un apport d'environ 1,8 à 2,0 g/kg/jour est alors préconisé pour soutenir pleinement le remodelage tissulaire (75).
Chez les seniors sédentaires sains, les recommandations nutritionnelles préconisent un apport quotidien d'environ 1,2 g/kg/jour afin de compenser la résistance anabolique liée au vieillissement et de préserver la masse musculaire (86,87). En cas de maladie aiguë ou chronique, ces besoins s'élèvent entre 1,3 et 1,5 g/kg/jour, et peuvent monter jusqu'à 1,6 g/kg/jour lors d'états cataboliques graves, d'infections sévères ou de traumatismes, afin de soutenir la réparation tissulaire et de freiner la dénutrition (86,87). À l'inverse, une exception stricte concerne les personnes âgées atteintes d'insuffisance rénale chronique sévère (débit de filtration glomérulaire < 30 mL/min/1,73 m²) non dialysées, pour lesquelles l'apport doit être restreint à 0,8 g/kg/jour afin de prévenir la surcharge urémique tout en préservant la fonction rénale résiduelle (86,87). Chez les femmes ménopausées de moins de 65 ans, des études préconisent un apport de 1,2 à 1,4 g/kg/jour afin de compenser le déclin œstrogénique et de préserver la masse musculaire (88,89); toutefois, chez les personnes actives ou sportives, ces recommandations s'ajustent directement au contexte et aux exigences de la pratique physique (83). Au-delà de 65 ans, les besoins rejoignent ceux de la population senior générale, les données actuelles n'indiquant pas que le statut ménopausique en lui-même nécessite des apports supérieurs ou inférieurs aux recommandations habituellement établies pour cette tranche d'âge (83).
5.2- Répartition ettiming: du débit quotidien à l'optimisation per-repas
Au-delà de la dose quotidienne globale, l'organisation temporelle des prises permet d'optimiser l'environnement anabolique sur 24 heures. La stratégie la plus robuste repose sur un fractionnement des apports en 3 à 5 repas, espacés d'environ 3 à 4 heures, apportant un profil complet en acides aminés essentiels (14,83).
Chaque prise doit fournir une dose suffisante pour franchir le seuil leucinique, indispensable à l'activation maximale du complexe kinase mTORC1 (12). Cela correspond à un apport ciblé de 2,5 à 3,0 g de leucine par repas, traduit en pratique par 0,25 à 0,40 g/kg de protéines de haute valeur biologique chez le jeune adulte (environ 20 à 40 g), et 0,30 à 0,50 g/kg (environ 30 à 40 g) chez l'athlète Master afin de surmonter la résistance anabolique (84).
S'agissant du timingautour de l'exercice, la notion rigide d'une "fenêtre anabolique" de quelques minutes s'est effacée au profit d'une période de sensibilité musculaire accrue persistant au moins 24 à 48 heures post-effort (90,91). Néanmoins, la prise d'une dose post-exercice de 20 à 40 g reste une ancre pratique judicieuse pour sécuriser la synthèse protéique myofibrillaire, en particulier chez les pratiquants entraînés et les Masters dont la fenêtre anabolique est plus restreinte (75,83,92). En endurance, la restauration du glycogène demeure prioritaire ; toutefois, l'association de protéines (~0,4 g/kg) aux glucides optimise la récupération et la restauration des capacités d'effort lorsque les apports glucidiques sont sous-optimaux ou que les séances sont rapprochées (93,94).
Enfin, la consommation d'une collation pré-sommeil de 30 à 45 g de protéines à digestion lente (ex. caséine micellaire) 1 à 2 heures avant le coucher constitue une option pertinente pour maintenir l'hyperaminoacidémie et stimuler la synthèse protéique nocturne lors de cycles d'entraînement à fort volume (95,96).
En somme, ce n'est pas un seul repas isolé qui fait la différence, mais bien la répétition chronique de cette interaction entre entraînement et nutrition équilibrée qui permet, à long terme, une accumulation protéique nette et un développement musculaire optimal.
Le tableau suivant récapitule l'ajustement de ces apports selon les différentes catégories de populations et de disciplines :
|
Population |
Niveau d'activité |
Type de sport / Objectif |
Apport (g/kg/j) |
|---|---|---|---|
Adulte (< 65 ans) | Sédentaire | Maintenance de base | 0,83 à 1,2 |
| Sportif | Endurance (Loisir/intermédiaire) | 1,4-1.6 |
|
| Endurance (Entraîné) | Entraînement : 1,83 (1,95 en cas de train ‘low carb’ ou ‘low energy’) |
|
|
| 24h après effort : 2,1 à 2,6 |
|
| Résistance (Maintien) | 1,6 à 1,8 |
|
| Résistance (Prise de masse) | 1,8 à 2,2 |
|
| Résistance (Perte de masse grasse) | 2,2 à 3 |
Ménopause | Sédentaire | Maintenance de base | 1,2 à 1,4 |
Adulte Âgé (>65 ans) | Sédentaire | Prévention de la sarcopénie | 1,2 à 1,6 (0,8 en cas de maladie rénale) |
6. Les origines des protéines :
Dans le domaine de l'alimentation et de la supplémentation sportive, les protéines proviennent de deux grandes origines distinctes : le règne animal et le règne végétal. Bien qu'elles fournissent toutes les deux les briques de base de l'organisme, leurs structures moléculaires et leur comportement lors de la digestion diffèrent sensiblement.
Les protéines d'origine animale : Issues principalement du lait (whey, caséine), des œufs, de la viande ou du poisson, elles sont historiquement les sources de référence en nutrition sportive. Leur principal point fort est leur haute valeur biologique : elles possèdent un profil complet en acides aminés essentiels, une forte teneur en leucine et une excellente digestibilité. L'organisme les assimile donc de manière très rapide et efficace (97).
Les protéines d'origine végétale : Issues des légumineuses (pois, soja, fèves), des céréales (riz, avoine) ou de graines (chanvre, courge), elles connaissent un essor massif sur le marché. Longtemps jugées moins efficaces en raison de leurs acides aminés limitants et d'une digestibilité naturelle plus faible sous leur forme brute, les technologies actuelles d'extraction (isolats et concentrés) permettent aujourd'hui d'obtenir des poudres hautement purifiées. De plus, elles offrent des bénéfices majeurs : absence de lactose (ce qui élimine les troubles digestifs fréquents avec certaines qualités dewhey), absence de cholestérol et un bilan environnemental beaucoup plus favorable (98,99).
6.1. Évolution des habitudes de consommation : Les protéines d'origine végétale au-delà du public végétarien
Le discours classique autour des protéines végétales a longtemps été ciblé presque exclusivement sur les personnes végétariennes ou végétaliennes. Pourtant, les habitudes de consommation évoluent rapidement : l'intérêt pour ces sources de protéines se généralise désormais à l'ensemble de la population. Les consommateurs, y compris les omnivores, intègrent de plus en plus le végétal dans leur alimentation quotidienne, portés par une prise de conscience croissante des avantages que cela suppose, tant pour notre santé que pour la planète.
Les avantages pour notre santé
Selon la manière dont elles sont consommées, les protéines végétales apportent des bénéfices physiologiques bien distincts.
- Protéines sous forme naturelle et entière (légumineuses, céréales, graines)
Soutien du microbiote intestinal : Les sources entières (principalement les légumineuses) conservent intacte leur matrice de fibres spécifiques (comme les galacto-oligosaccharides ou l'amidon résistant). Ces composés agissent comme des prébiotiques majeurs qui nourrissent les bactéries bénéfiques de l'intestin, renforçant ainsi la barrière digestive et l'immunité (100).
Richesse en micronutriments collatéraux : Consommer la plante entière permet de bénéficier naturellement de ses vitamines, minéraux (magnésium, potassium) et polyphénols antioxydants, qui aident à lutter contre le stress oxydatif et l'inflammation (101).
Absence de cholestérol et qualité des lipides : Les plantes affichent un taux de cholestérol strictement nul. De plus, les matières grasses naturellement présentes dans les sources végétales entières (comme les graines de courge, de chanvre ou le soja) sont majoritairement des acides gras insaturés (omégas 3, 6, 9), reconnus pour protéger le système cardiovasculaire (102,103).
Régulation de la satiété : La présence conjointe de fibres et de glucides complexes ralentit la digestion, offrant une libération d'énergie stable et un excellent contrôle de l'appétit (104).
- Protéines sous forme d'isolats en poudre (Suppléments)
Haute concentration protéique sans surcharge calorique : Le procédé industriel d'isolation élimine les fibres et les glucides de la plante pour ne garder que la protéine (souvent à plus de 70 %). Cela permet d'atteindre des besoins élevés sans l'inconvénient d'un excès de calories.
Excellente qualité nutritionnelle : Les isolats végétaux sont sans lactose et présentent une teneur fortement réduite en anti-nutriments, notamment les phytates présents dans la plante brute. Cela permet de limiter les interactions avec l’absorption de certains minéraux tels que le fer et le zinc (105).
Protection cardiovasculaire : Les sources végétales ne contiennent ni cholestérol ni graisses saturées, ce qui aide à maintenir un bon bilan lipidique. C'est une alternative majeure pour les sportifs qui consomment quotidiennement de grandes quantités de protéines d' origine animale et souhaitent protéger leur système cardiovasculaire (106).
Les avantages pour la planète
La nutrition est aujourd'hui indissociable de l'impact environnemental, et la sensibilité des consommateurs à ce sujet ne cesse de grandir :
Une économie de ressources et viabilité des filières: La production de protéines végétales (comme le pois ou le riz) se distingue par une haute efficience écologique. Elle consomme beaucoup moins d'eau douce et nécessite nettement moins de surfaces agricoles que l'élevage laitier, s'imposant comme une alternative performante face aux coûts croissants et aux limites d'approvisionnement des sources animales (107,108).
Une préservation active des écosystèmes : L'accent mis sur le développement des cultures végétales constitue un levier majeur pour atténuer les effets du changement climatique et freiner la perte de biodiversité globale (108,109).
Une réduction de l'empreinte carbone : À gramme de protéine équivalent, le cycle de vie d'une protéine végétale génère nettement moins de gaz à effet de serre que celui d'une protéine animale (107).
En résumé, les protéines végétales ne sont plus un produit de niche pour un régime d'exclusion. Elles sont devenues une alternative logique et accessible à tous, validée par ceux qui cherchent à optimiser leur capital santé tout en réduisant leur empreinte écologique.
- Qualité nutritionnelle des protéines :
La qualité nutritionnelle d'une protéine est déterminée par plusieurs facteurs complémentaires, notamment sa composition enacides aminés essentiels, sa digestibilité et la biodisponibilité des acides aminés absorbés. Selon les recommandations de la FAO, de l'OMS et de l'ONU, une protéine est considérée de haute qualité lorsqu'elle fournit l'ensemble des acides aminés indispensables dans des proportions adaptées aux besoins physiologiques humains et lorsqu'elle est efficacement digérée et utilisée par l'organisme (110).
7.1. Caractéristiques des matrices protéiques : sources animales versus végétales
Les protéines d'origine animale, telles que celles du lait, des œufs ou de la viande, sont traditionnellement considérées comme des protéines complètes. Elles présentent généralement un profil équilibré en acides aminés essentiels ainsi qu'une digestibilité élevée, souvent supérieure à 90 %.
À l'inverse, les protéines végétales possèdent fréquemment un ou plusieurs acides aminés limitants. Les céréales sont généralement pauvres en lysine, tandis que les légumineuses présentent souvent des teneurs plus faibles en acides aminés soufrés, notamment la méthionine. De plus, la présence de certains composés antinutritionnels tels que les phytates, les tanins ou les inhibiteurs de protéases peut réduire partiellement la digestibilité de certaines protéines végétales (111,112).
Toutefois, cette distinction entre protéines animales et végétales doit être nuancée. D'une part, plusieurs sources végétales présentent une qualité protéique élevée, notamment le soja, le quinoa ou certaines protéines issues de légumineuses. D'autre part, les procédés technologiques modernes permettent d'améliorer significativement les caractéristiques nutritionnelles des protéines végétales. Les concentrés, isolats et hydrolysats protéiques utilisés dans les formulations alimentaires et les compléments nutritionnels affichent généralement des coefficients de digestibilité supérieurs à celles observées dans les matrices végétales brutes.
Ainsi, la qualité nutritionnelle d'un isolat de protéine de pois ou de soja peut se rapprocher de celle de certaines protéines animales lorsque les procédés de purification réduisent la teneur en facteurs antinutritionnels et augmentent la disponibilité des acides aminés (99,110).
7.2. Indicateurs standardisés d'évaluation de la qualité protéique
L'évaluation de la qualité protéique ne repose pas uniquement sur la teneur totale en protéines mais sur plusieurs indicateurs standardisés qui intègrent le profil en acides aminés et les contraintes de la digestion.
L'Indice Chimique (Chemical score)
Historiquement, l'indice chimique constitue l'une des premières méthodes d'évaluation. Il compare la teneur de chaque acide aminé indispensable d'une protéine au profil de référence établi pour les besoins humains :
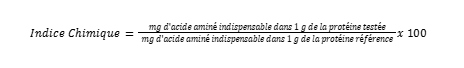
L'acide aminé présentant le déficit relatif le plus important est alors identifié comme l'acide aminé limitant, fixant ainsi la valeur théorique maximale d'utilisation de la protéine.
L'indice PDCAAS (Protein Digestibility-Corrected Amino Acid Score)
Afin d'intégrer également la digestibilité, la FAO a ensuite recommandé l'utilisation du PDCAAS, qui corrige le score en acides aminés par la digestibilité fécale globale de la protéine (113) :
PDCAAS=Indice chimique d'acide aminé limitant x Coefficient de digestibilité fécale vraie
Pendant plusieurs décennies, le PDCAAS a constitué la méthode de référence internationale pour l'évaluation de la qualité protéique des aliments. Cet indice est arbitrairement plafonné à 1,0 (100 %), score atteint par la majorité des isolats végétaux hautement purifiés.
L'indice DIAAS (Digestible Indispensable Amino Acid Score)
Plus récemment, la FAO a proposé le DIAAS, considéré comme plus précis (114). Contrairement au PDCAAS, le DIAAS évalue la digestibilité iléale de chacun des acides aminés indispensables individuellement, mesurée à la fin de l'intestin grêle pour éviter le biais des fermentations bactériennes coliques. Sa formule s'énonce ainsi :
DIAAS=Indice chimique d'acide aminé limitant x Digestibilité iléale vraie de cet acide aminé
Le score DIAAS final d'une protéine correspond au score de l'acide aminé indispensable digestible le plus limitant (la valeur la plus faible parmi tous les acides aminés indispensables). Cette méthode tend à mieux différencier les sources protéiques et met en évidence les limitations de certaines protéines végétales, tout en reconnaissant la qualité élevée de plusieurs isolats végétaux modernes. De plus, le DIAAS supprime le plafonnement à 1,0, ce qui permet de refléter la valeur nutritionnelle réelle des mélanges de protéines.
7.3. Stratégies d'optimisation des formulations végétales
Malgré des différences parfois observées à l'échelle d'un ingrédient pris isolément, les protéines végétales peuvent parfaitement couvrir les besoins en acides aminés indispensables lorsqu'elles sont intégrées dans une alimentation diversifiée ou des matrices optimisées. Trois grandes stratégies permettent aujourd'hui de maximiser leur potentielnutritionnel :
- La complémentarité : L'association de céréales (par exemple : riz ou avoine) et de légumineuses (pois ou fève) permet de compenser les acides aminés limitants de chaque groupe alimentaire (la lysine pour les premières, les acides aminés soufrés pour les secondes) et d'obtenir un profil complet proche des besoins humains. Cette approche s'applique aussi bien à l'échelle industrielle au sein d'une même formulation pour optimiser directement les indices DIAAS, qu'à l'échelle métabolique journalière. La recherche montre en effet qu'une consommation diversifiée de ces sources tout au long de la journée suffit à équilibrer le pool d'acides aminés de l'organisme, sans nécessiter une co-ingestion stricte à chaque repas.
- L'enrichissement ciblé : Cette méthode consiste à réaliser une fortification de la matrice végétale au moyen d'acides aminés essentiels libres, comme la méthionine ou de leucine. Cela permet de corriger artificiellement l'acide aminé limitant d'une source unique pour élever sa valeur biologique. L'apport spécifique de leucine libre permet notamment d'atteindre le seuil métabolique indispensable requis pour déclencher de manière optimale la synthèse protéique musculaire.
- Les procédés de purification industrielle : Le niveau de traitement technologique de la matière première végétale influence directement la qualité métabolique finale en séparant la fraction protéique des glucides et des composés antinutritionnels :
- Les concentrats: Présentent une pureté intermédiaire (60 à 80 % de protéines) et conservent une partie des fibres de la plante.
- Les isolats: Poussent la teneur en protéines au-delà de 85 à 90 % et éliminent la quasi-totalité de la matrice glucidique et des facteurs antinutritionnels (phytates, tanins), ce qui augmente mécaniquement le coefficient de digestibilité vraie.
- Les hydrolysats: Soumettent les isolats à un découpage enzymatique afin d'obtenir des peptides de petite taille (di- et tripeptides), offrant une cinétique d'assimilation ultra-rapide par l'organisme.
8. Applications cliniques et performance sportive
De nombreux facteurs influencent la réponse de la synthèse protéique musculaire (MyoPS) à l'ingestion de protéines. Le moment de l'ingestion par rapport à l'effort physique, les autres nutriments ingérés simultanément, les caractéristiques des protéines (composition en acides aminés et propriétés digestives) et la quantité ingérée ont tous un impact sur cette réponse (115). La répartition des protéines dans le temps semble également influencer la réponse métabolique (116). Parmi ces facteurs, la quantité de protéines ingérées en une seule prise semble avoir l'influence la plus importante sur la réponse de la MyoPS (117).
6.1. Données à court terme : critères d'optimisation de la synthèse protéique musculaire (MyoPS)
Pour maximiser la synthèse protéique musculaire (MyoPS) après un entraînement, le corps humain s'appuie sur des mécanismes biologiques précis où la source de protéines joue un rôle majeur à travers sa composition en acides aminés et ses propriétés digestives (115). Les nombreuses recherches menées sur la protéine de lactosérum (whey) ont permis d'établir « l'hypothèse du seuil de leucine » (118) pour expliquer les différences d'amplitude de la réponse anabolique entre les différentes sources.
Ainsi, dans le contexte de la performance et de la récupération, une protéine est considérée comme étant de haute qualité lorsqu'elle est capable de valider simultanément trois critères biochimiques majeurs par prise :
- Un seuil de leucine suffisant (2,5 à 3 g par prise) : la protéine doit fournir une quantité de leucine capable d’activer efficacement les voies de signalisation de la synthèse protéique musculaire (notamment mTOR), condition nécessaire au déclenchement d’une réponse anabolique significative (119,120).
- L'apport complet d'au moins 10 g d'acides aminés essentiels (EAA) : Bien que l'entraînement soit le stimulus primaire de l'anabolisme, les acides aminés essentiels (EAA) sont indispensables pour permettre la synthèse protéique musculaire (MyoPS). Si l’activation de la MyoPS est déjà significative à partir d’environ 6 g d’EAA (121), les données de dose-réponse pour les EAA oraux montrent qu’un apport situé entre 8 et 12 g d’AAE est optimal (122), avant d’atteindre un plateau aux alentours de 15 à 18 g (123). Bien que l’entraînement constitue le principal stimulus de l’anabolisme musculaire, les EAA sont indispensables à la MyoPS. La MyoPS augmente avec la dose : elle est déjà significativement stimulée autour de 6 g d’EAA (121),, devient optimale entre 8 et 12 g (122–124). La protéine doit contenir l’ensemble des 9 EAA, garantissant la disponibilité de tous les substrats nécessaires à la construction des protéines musculaires, sans limitation liée à un acide aminé déficitaire.
En pratique, ces deux critères sont généralement atteints simultanément par des apports d’environ 20 à 40 g de protéines complètes de haute qualité, ce qui permet d’optimiser la réponse de synthèse protéique musculaire postprandiale.
Néanmoins, ces seuils par prise ne prennent tout leur sens que s'ils s'intègrent dans une stratégie nutritionnelle globale.La réponse de synthèse protéique musculaire est en effet dépendante non seulement de la qualité de l’apport par repas, mais aussi de la quantité totale de protéines consommées sur la journée, ajustée en fonction des caractéristiques individuelles (poids corporel, masse maigre, niveau d’activité physique et objectifs).
9. Intérêt de choisir notre protéine végétale
C’est sur la base de ces données issues de la littérature scientifique que notre formule a été développée. L’objectif était de concevoir un produit capable de dépasser les limites des protéines végétales isolées, en combinant de manière complémentaire la protéine de riz et la protéine de pois. Cette association permet d’obtenir un profil complet en acides aminés essentiels, avec une qualité nutritionnelle et une digestibilité optimales (validées par un score PDCAAS de 1), tout en offrant une excellente tolérance digestive .
L’analyse de notre profil en acides aminés montre que chaque portion standard de 30 g a été conçue pour répondre aux principaux repères associés à une stimulation optimale de la synthèse protéique musculaire :
- Une teneur d’environ 2,5 g de leucine :correspondant au niveau associé à l’activation des voies de signalisation de la synthèse protéique musculaire.
- Un profil complet couvrant les 9 acides aminés essentiels: rendu possible par la complémentarité entre le riz et le pois, limitant ainsi tout risque de déséquilibre en acides aminés limitants.
- Un apport d'environ 10 g d’EAA par prise.
Dans ce cadre, la protéine végétale NUTRIPURE est conçue pour s’intégrer directement dans une prise unique, sans nécessiter d’ajustement de dose, et fournir au muscle les acides aminés nécessaires à la récupération et à l’adaptation musculaire, tout en limitant son impact environnemental.
Références Scientifiques
- Wu G. Dietary protein intake and human health. Food Funct. 2016;7(3):1251‑65. doi:10.1039/C5FO01530H
- Morris R, Black KA, Stollar EJ. Uncovering protein function: from classification to complexes. Essays Biochem. 10 août 2022;66(3):255‑85. doi:10.1042/EBC20200108 PubMed PMID: 35946411; PubMed Central PMCID: PMC9400073.
- Bilsborough S, Mann N. A Review of Issues of Dietary Protein Intake in Humans. Int J Sport Nutr Exerc Metab. avr 2006;16(2):129‑52. doi:10.1123/ijsnem.16.2.129
- Calvez J, Azzout-Marniche D, Tomé D. Protein quality, nutrition and health. Front Nutr. 2024;11:1406618. doi:10.3389/fnut.2024.1406618 PubMed PMID: 38863590; PubMed Central PMCID: PMC11165183.
- Fröhlich E, Wahl R. The forgotten effects of thyrotropin-releasing hormone: Metabolic functions and medical applications. Front Neuroendocrinol. janv 2019;52:29‑43. doi:10.1016/j.yfrne.2018.06.006
- Wolfe RR. The underappreciated role of muscle in health and disease. Am J Clin Nutr. déc 2006;84(3):475‑82. doi:10.1093/ajcn/84.3.475
- Phillips SM. A Brief Review of Critical Processes in Exercise-Induced Muscular Hypertrophy. Sports Med. mai 2014;44(S1):71‑7. doi:10.1007/s40279-014-0152-3
- Tarnopolsky M. Protein requirements for endurance athletes. Nutrition. juill 2004;20(7‑8):662‑8. doi:10.1016/j.nut.2004.04.008
- Phillips SM, Chevalier S, Leidy HJ. Protein “requirements” beyond the RDA: implications for optimizing health. Appl Physiol Nutr Metab. mai 2016;41(5):565‑72. doi:10.1139/apnm-2015-0550
- Kitessa SM, Abeywardena MY. Lipid-Induced Insulin Resistance in Skeletal Muscle: The Chase for the Culprit Goes from Total Intramuscular Fat to Lipid Intermediates, and Finally to Species of Lipid Intermediates. Nutrients. 29 juill 2016;8(8):466. doi:10.3390/nu8080466 PubMed PMID: 27483311; PubMed Central PMCID: PMC4997379.
- Phillips SM, Tipton KD, Aarsland A, Wolf SE, Wolfe RR. Mixed muscle protein synthesis and breakdown after resistance exercise in humans. Am J Physiol-Endocrinol Metab. 1 juill 1997;273(1):E99‑107. doi:10.1152/ajpendo.1997.273.1.E99
- Atherton PJ, Etheridge T, Watt PW, Wilkinson D, Selby A, Rankin D, et al. Muscle full effect after oral protein: time-dependent concordance and discordance between human muscle protein synthesis and mTORC1 signaling. Am J Clin Nutr. nov 2010;92(5):1080‑8. doi:10.3945/ajcn.2010.29819
- Holowaty MNH, Lees MJ, Abou Sawan S, Paulussen KJM, Jäger R, Purpura M, et al. Leucine ingestion promotes mTOR translocation to the periphery and enhances total and peripheral RPS6 phosphorylation in human skeletal muscle. Amino Acids. févr 2023;55(2):253‑61. doi:10.1007/s00726-022-03221-w
- Jäger R, Kerksick CM, Campbell BI, Cribb PJ, Wells SD, Skwiat TM, et al. International Society of Sports Nutrition Position Stand: protein and exercise. J Int Soc Sports Nutr. 3 janv 2017;14(1):20. doi:10.1186/s12970-017-0177-8
- Iglesias P. Muscle in Endocrinology: From Skeletal Muscle Hormone Regulation to Myokine Secretion and Its Implications in Endocrine–Metabolic Diseases. J Clin Med. 25 juin 2025;14(13):4490. doi:10.3390/jcm14134490
- Pabla P, Jones EJ, Piasecki M, Phillips BE. Skeletal muscle dysfunction with advancing age. Clin Sci. 17 juill 2024;138(14):863‑82. doi:10.1042/CS20231197
- Lin D, Zhang L, Huang C, Shao W. Skeletal muscle metabolism in health and disease: Mechanisms, interventions, and clinical perspectives. iScience. mars 2026;29(3):115024. doi:10.1016/j.isci.2026.115024
- DeFronzo RA, Tripathy D. Skeletal muscle insulin resistance is the primary defect in type 2 diabetes. Diabetes Care. nov 2009;32 Suppl 2(Suppl 2):S157-163. doi:10.2337/dc09-S302 PubMed PMID: 19875544; PubMed Central PMCID: PMC2811436.
- Merz KE, Thurmond DC. Role of Skeletal Muscle in Insulin Resistance and Glucose Uptake. Compr Physiol. juill 2020;10(3):785‑809. doi:10.1002/j.2040-4603.2020.tb00136.x
- Mingzheng X, You W. AMPK/mTOR balance during exercise: implications for insulin resistance in aging muscle. Mol Cell Biochem. déc 2025;480(12):5941‑53. doi:10.1007/s11010-025-05362-4
- Shou J, Chen PJ, Xiao WH. Mechanism of increased risk of insulin resistance in aging skeletal muscle. Diabetol Metab Syndr. déc 2020;12(1):14. doi:10.1186/s13098-020-0523-x
- Samuel VT, Shulman GI. The pathogenesis of insulin resistance: integrating signaling pathways and substrate flux. J Clin Invest. janv 2016;126(1):12‑22. doi:10.1172/JCI77812 PubMed PMID: 26727229; PubMed Central PMCID: PMC4701542.
- Petersen MC, Shulman GI. Mechanisms of Insulin Action and Insulin Resistance. Physiol Rev. 1 oct 2018;98(4):2133‑223. doi:10.1152/physrev.00063.2017
- Goodpaster BH, He J, Watkins S, Kelley DE. Skeletal Muscle Lipid Content and Insulin Resistance: Evidence for a Paradox in Endurance-Trained Athletes. J Clin Endocrinol Metab. 1 déc 2001;86(12):5755‑61. doi:10.1210/jcem.86.12.8075
- Shepherd SO, Cocks M, Meikle PJ, Mellett NA, Ranasinghe AM, Barker TA, et al. Lipid droplet remodelling and reduced muscle ceramides following sprint interval and moderate-intensity continuous exercise training in obese males. Int J Obes. déc 2017;41(12):1745‑54. doi:10.1038/ijo.2017.170
- Li X, Li Z, Zhao M, Nie Y, Liu P, Zhu Y, et al. Skeletal Muscle Lipid Droplets and the Athlete’s Paradox. Cells. 15 mars 2019;8(3):249. doi:10.3390/cells8030249
- Goodpaster BH, Sparks LM. Metabolic Flexibility in Health and Disease. Cell Metab. mai 2017;25(5):1027‑36. doi:10.1016/j.cmet.2017.04.015
- Hawley JA, Hargreaves M, Joyner MJ, Zierath JR. Integrative Biology of Exercise. Cell. nov 2014;159(4):738‑49. doi:10.1016/j.cell.2014.10.029
- Mingzheng X, You W. AMPK/mTOR balance during exercise: implications for insulin resistance in aging muscle. Mol Cell Biochem. déc 2025;480(12):5941‑53. doi:10.1007/s11010-025-05362-4
- Jäger S, Handschin C, St.-Pierre J, Spiegelman BM. AMP-activated protein kinase (AMPK) action in skeletal muscle via direct phosphorylation of PGC-1α. Proc Natl Acad Sci. 17 juill 2007;104(29):12017‑22. doi:10.1073/pnas.0705070104
- Consitt LA, Dudley C, Saxena G. Impact of Endurance and Resistance Training on Skeletal Muscle Glucose Metabolism in Older Adults. Nutrients. 3 nov 2019;11(11):2636. doi:10.3390/nu11112636
- Pedersen BK, Febbraio MA. Muscles, exercise and obesity: skeletal muscle as a secretory organ. Nat Rev Endocrinol. août 2012;8(8):457‑65. doi:10.1038/nrendo.2012.49
- Severinsen MCK, Pedersen BK. Muscle-Organ Crosstalk: The Emerging Roles of Myokines. Endocr Rev. 1 août 2020;41(4):594‑609. doi:10.1210/endrev/bnaa016 PubMed PMID: 32393961; PubMed Central PMCID: PMC7288608.
- Boström P, Wu J, Jedrychowski MP, Korde A, Ye L, Lo JC, et al. A PGC1-α-dependent myokine that drives brown-fat-like development of white fat and thermogenesis. Nature. janv 2012;481(7382):463‑8. doi:10.1038/nature10777
- Rao RR, Long JZ, White JP, Svensson KJ, Lou J, Lokurkar I, et al. Meteorin-like Is a Hormone that Regulates Immune-Adipose Interactions to Increase Beige Fat Thermogenesis. Cell. juin 2014;157(6):1279‑91. doi:10.1016/j.cell.2014.03.065
- Pedersen BK. Physical activity and muscle–brain crosstalk. Nat Rev Endocrinol. juill 2019;15(7):383‑92. doi:10.1038/s41574-019-0174-x
- Wrann CD, White JP, Salogiannnis J, Laznik-Bogoslavski D, Wu J, Ma D, et al. Exercise Induces Hippocampal BDNF through a PGC-1α/FNDC5 Pathway. Cell Metab. nov 2013;18(5):649‑59. doi:10.1016/j.cmet.2013.09.008
- Brotto M, Bonewald L. Bone and muscle: Interactions beyond mechanical. Bone. nov 2015;80:109‑14. doi:10.1016/j.bone.2015.02.010
- Hamrick MW. A role for myokines in muscle-bone interactions. Exerc Sport Sci Rev. janv 2011;39(1):43‑7. doi:10.1097/JES.0b013e318201f601 PubMed PMID: 21088601; PubMed Central PMCID: PMC3791922.
- Pedersen BK, Febbraio MA. Muscle as an Endocrine Organ: Focus on Muscle-Derived Interleukin-6. Physiol Rev. oct 2008;88(4):1379‑406. doi:10.1152/physrev.90100.2007
- Petersen AMW, Pedersen BK. The anti-inflammatory effect of exercise. J Appl Physiol. avr 2005;98(4):1154‑62. doi:10.1152/japplphysiol.00164.2004
- Phillips SM, Van Loon LJC. Dietary protein for athletes: From requirements to optimum adaptation. J Sports Sci. janv 2011;29(sup1):S29‑38. doi:10.1080/02640414.2011.619204
- Sapolsky RM, Romero LM, Munck AU. How Do Glucocorticoids Influence Stress Responses? Integrating Permissive, Suppressive, Stimulatory, and Preparative Actions*. Endocr Rev. 1 févr 2000;21(1):55‑89. doi:10.1210/edrv.21.1.0389
- Schakman O, Kalista S, Barbé C, Loumaye A, Thissen JP. Glucocorticoid-induced skeletal muscle atrophy. Int J Biochem Cell Biol. oct 2013;45(10):2163‑72. doi:10.1016/j.biocel.2013.05.036
- Pedersen BK, Febbraio MA. Muscles, exercise and obesity: skeletal muscle as a secretory organ. Nat Rev Endocrinol. août 2012;8(8):457‑65. doi:10.1038/nrendo.2012.49
- Pedersen BK, Saltin B. Exercise as medicine – evidence for prescribing exercise as therapy in 26 different chronic diseases. Scand J Med Sci Sports. déc 2015;25(S3):1‑72. doi:10.1111/sms.12581
- Silverman MN, Deuster PA. Biological mechanisms underlying the role of physical fitness in health and resilience. Interface Focus. 6 oct 2014;4(5):20140040. doi:10.1098/rsfs.2014.0040
- Herman JP, McKlveen JM, Ghosal S, Kopp B, Wulsin A, Makinson R, et al. Regulation of the Hypothalamic-Pituitary-Adrenocortical Stress Response. Compr Physiol. 15 mars 2016;6(2):603‑21. doi:10.1002/cphy.c150015 PubMed PMID: 27065163; PubMed Central PMCID: PMC4867107.
- Sapolsky RM, Krey LC, McEWEN BS. The Neuroendocrinology of Stress and Aging: The Glucocorticoid Cascade Hypothesis*. Endocr Rev. août 1986;7(3):284‑301. doi:10.1210/edrv-7-3-284
- Boecker H, Sprenger T, Spilker ME, Henriksen G, Koppenhoefer M, Wagner KJ, et al. The Runner’s High: Opioidergic Mechanisms in the Human Brain. Cereb Cortex. 1 nov 2008;18(11):2523‑31. doi:10.1093/cercor/bhn013
- Meeusen R, Watson P, Hasegawa H, Roelands B, Piacentini MF. Brain neurotransmitters in fatigue and overtraining. Appl Physiol Nutr Metab. oct 2007;32(5):857‑64. doi:10.1139/H07-080
- Booth FW, Roberts CK, Laye MJ. Lack of Exercise Is a Major Cause of Chronic Diseases. Compr Physiol. avr 2012;2(2):1143‑211. doi:10.1002/j.2040-4603.2012.tb00425.x
- Cruz-Jentoft AJ, Bahat G, Bauer J, Boirie Y, Bruyère O, Cederholm T, et al. Sarcopenia: revised European consensus on definition and diagnosis. Age Ageing. 1 janv 2019;48(1):16‑31. doi:10.1093/ageing/afy169
- Ferrucci L, Fabbri E. Inflammageing: chronic inflammation in ageing, cardiovascular disease, and frailty. Nat Rev Cardiol. sept 2018;15(9):505‑22. doi:10.1038/s41569-018-0064-2
- Izquierdo M, Merchant RA, Morley JE, Anker SD, Aprahamian I, Arai H, et al. International Exercise Recommendations in Older Adults (ICFSR): Expert Consensus Guidelines. J Nutr Health Aging. juill 2021;25(7):824‑53. doi:10.1007/s12603-021-1665-8
- Morton RW, Murphy KT, McKellar SR, Schoenfeld BJ, Henselmans M, Helms E, et al. A systematic review, meta-analysis and meta-regression of the effect of protein supplementation on resistance training-induced gains in muscle mass and strength in healthy adults. Br J Sports Med. mars 2018;52(6):376‑84. doi:10.1136/bjsports-2017-097608 PubMed PMID: 28698222; PubMed Central PMCID: PMC5867436.
- Bull FC, Al-Ansari SS, Biddle S, Borodulin K, Buman MP, Cardon G, et al. World Health Organization 2020 guidelines on physical activity and sedentary behaviour. Br J Sports Med. déc 2020;54(24):1451‑62. doi:10.1136/bjsports-2020-102955
- Morton RW, Murphy KT, McKellar SR, Schoenfeld BJ, Henselmans M, Helms E, et al. A systematic review, meta-analysis and meta-regression of the effect of protein supplementation on resistance training-induced gains in muscle mass and strength in healthy adults. Br J Sports Med. mars 2018;52(6):376‑84. doi:10.1136/bjsports-2017-097608
- Phillips SM, Van Loon LJC. Dietary protein for athletes: From requirements to optimum adaptation. J Sports Sci. janv 2011;29(sup1):S29‑38. doi:10.1080/02640414.2011.619204
- Stokes T, Hector A, Morton R, McGlory C, Phillips S. Recent Perspectives Regarding the Role of Dietary Protein for the Promotion of Muscle Hypertrophy with Resistance Exercise Training. Nutrients. 7 févr 2018;10(2):180. doi:10.3390/nu10020180
- Wackerhage H, Schoenfeld BJ, Hamilton DL, Lehti M, Hulmi JJ. Stimuli and sensors that initiate skeletal muscle hypertrophy following resistance exercise. J Appl Physiol. 1 janv 2019;126(1):30‑43. doi:10.1152/japplphysiol.00685.2018
- Bier R. Les coûts énergétiques du métabolisme des protéines : une équipe performante et efficace au service de l’Oncle Sam. In: Medicine I of, éditeur. The Role of Protein and Amino Acids in Sustaining and Enhancing Performance [Internet]. Washington, DC: National Academies Press; 1999. p. 109‑20. Disponible sur: https://nap.nationalacademies.org/read/9620/chapter/9?utm_source=chatgpt.com doi:10.17226/9620
- Waterlow JC, Millward DJ. Coût énergétique du renouvellement des protéines et autres constituants cellulaires. In: Wieser W, Gnaiger E, éditeurs. Transformations énergétiques dans les cellules et les organismes. Stuttgart: Georg Thieme Verlag; 1989. p. 277‑82.
- Clark N. Nancy Clark’s Sports Nutrition Guidebook. Sixth. Champaign, IL: Human Kinetics; 2020.
- Dunford M, Doyle JA. Nutrition for Sports & Exercise. Cengage; 2022. 388–429 p.
- Millward DJ. Protein and amino acid requirements of adults: current controversies. Can J Appl Physiol. 2001;26(S1):S130‑40.
- Rand WM, Pellett PL, Young VR. Meta-analysis of nitrogen balance studies for estimating protein requirements in healthy adults. Am J Clin Nutr. janv 2003;77(1):109‑27. doi:10.1093/ajcn/77.1.109
- Tipton KD, Wolfe RR. Protein and amino acids for athletes. J Sports Sci. janv 2004;22(1):65‑79. doi:10.1080/0264041031000140554
- Scientific Opinion on Dietary Reference Values for protein. EFSA J. (2012;10(2):2557). doi:10.2903/j.efsa.2012.2557
- Elango R, Humayun MA, Ball RO, Pencharz PB. Evidence that protein requirements have been significantly underestimated: Curr Opin Clin Nutr Metab Care. janv 2010;13(1):52‑7. doi:10.1097/MCO.0b013e328332f9b7
- Morton RW, Murphy KT, McKellar SR, Schoenfeld BJ, Henselmans M, Helms E, et al. A systematic review, meta-analysis and meta-regression of the effect of protein supplementation on resistance training-induced gains in muscle mass and strength in healthy adults. Br J Sports Med. mars 2018;52(6):376‑84. doi:10.1136/bjsports-2017-097608
- Campbell B, Kreider RB, Ziegenfuss T, La Bounty P, Roberts M, Burke D, et al. International Society of Sports Nutrition position stand: protein and exercise. J Int Soc Sports Nutr. 13 juill 2007;4(1):8. doi:10.1186/1550-2783-4-8
- Cermak NM, Res PT, De Groot LC, Saris WH, Van Loon LJ. Protein supplementation augments the adaptive response of skeletal muscle to resistance-type exercise training: a meta-analysis. Am J Clin Nutr. déc 2012;96(6):1454‑64. doi:10.3945/ajcn.112.037556
- Băltărețu C, Iacobini A. Revisiting Protein Intake in Fitness Training: New Evidence on Dose, Timing, and Skeletal Muscle Adaptation. Int J Educ Leadersh Artif Intell Comput Bus Life Sci Soc. 6 févr 2026;5:70‑80. doi:10.65222/VIRAL.2026.2.11.31
- Witard OC, Hearris M, Morgan PT. Protein Nutrition for Endurance Athletes: A Metabolic Focus on Promoting Recovery and Training Adaptation. Sports Med. juin 2025;55(6):1361‑76. doi:10.1007/s40279-025-02203-8
- Humayun MA, Elango R, Ball RO, Pencharz PB. Reevaluation of the protein requirement in young men with the indicator amino acid oxidation technique. Am J Clin Nutr. oct 2007;86(4):995‑1002. doi:10.1093/ajcn/86.4.995
- Amawi A, AlKasasbeh W, Jaradat M, Almasri A, Alobaidi S, Hammad AA, et al. Athletes’ nutritional demands: a narrative review of nutritional requirements. Front Nutr. 18 janv 2024;10:1331854. doi:10.3389/fnut.2023.1331854
- Vitale K, Getzin A. Nutrition and Supplement Update for the Endurance Athlete: Review and Recommendations. Nutrients. 7 juin 2019;11(6):1289. doi:10.3390/nu11061289
- Kato H, Suzuki K, Bannai M, Moore DR. Protein Requirements Are Elevated in Endurance Athletes after Exercise as Determined by the Indicator Amino Acid Oxidation Method. Fisher G, éditeur. PLOS ONE. 20 juin 2016;11(6):e0157406. doi:10.1371/journal.pone.0157406
- Baranauskas M, Kupčiūnaitė I, Stukas R. Dietary Intake of Protein and Essential Amino Acids for Sustainable Muscle Development in Elite Male Athletes. Nutrients. 15 sept 2023;15(18):4003. doi:10.3390/nu15184003
- Bandegan A, Courtney-Martin G, Rafii M, Pencharz PB, Lemon PWR. Indicator amino acid oxidation protein requirement estimate in endurance-trained men 24 h postexercise exceeds both the EAR and current athlete guidelines. Am J Physiol-Endocrinol Metab. 1 mai 2019;316(5):E741‑8. doi:10.1152/ajpendo.00174.2018
- Brook MS, Wilkinson DJ, Mitchell WK, Lund JN, Phillips BE, Szewczyk NJ, et al. Synchronous deficits in cumulative muscle protein synthesis and ribosomal biogenesis underlie age‐related anabolic resistance to exercise in humans. J Physiol. 15 déc 2016;594(24):7399‑417. doi:10.1113/JP272857
- Moore DR. Protein Requirements for Master Athletes: Just Older Versions of Their Younger Selves. Sports Med. sept 2021;51(S1):13‑30. doi:10.1007/s40279-021-01510-0
- Jahan-Mihan A, El Khoury D, Brewer GJ, Chapleau A. Current Perspectives on Protein Supplementation in Athletes: General Guidance and Special Considerations for Diabetes-A Narrative Review. Nutrients. 11 nov 2025;17(22):3528. doi:10.3390/nu17223528 PubMed PMID: 41305580; PubMed Central PMCID: PMC12655512.
- Doering TM, Reaburn PR, Cox G, Jenkins DG. Comparison of Postexercise Nutrition Knowledge and Postexercise Carbohydrate and Protein Intake between Australian Masters and Younger Triathletes. Int J Sport Nutr Exerc Metab. août 2016;26(4):338‑46. doi:10.1123/ijsnem.2015-0289
- Bauer J, Biolo G, Cederholm T, Cesari M, Cruz-Jentoft AJ, Morley JE, et al. Evidence-Based Recommendations for Optimal Dietary Protein Intake in Older People: A Position Paper From the PROT-AGE Study Group. J Am Med Dir Assoc. août 2013;14(8):542‑59. doi:10.1016/j.jamda.2013.05.021
- Deutz NEP, Bauer JM, Barazzoni R, Biolo G, Boirie Y, Bosy-Westphal A, et al. Protein intake and exercise for optimal muscle function with aging: Recommendations from the ESPEN Expert Group. Clin Nutr. déc 2014;33(6):929‑36. doi:10.1016/j.clnu.2014.04.007
- Silva TR, Spritzer PM. Skeletal muscle mass is associated with higher dietary protein intake and lower body fat in postmenopausal women: a cross-sectional study. Menopause. mai 2017;24(5):502‑9. doi:10.1097/GME.0000000000000793
- Meng X, Zhu K, Devine A, Kerr DA, Binns CW, Prince RL. A 5-Year Cohort Study of the Effects of High Protein Intake on Lean Mass and BMC in Elderly Postmenopausal Women. J Bone Miner Res. 1 nov 2009;24(11):1827‑34. doi:10.1359/jbmr.090513
- Damas F, Phillips S, Vechin FC, Ugrinowitsch C. A Review of Resistance Training-Induced Changes in Skeletal Muscle Protein Synthesis and Their Contribution to Hypertrophy. Sports Med. juin 2015;45(6):801‑7. doi:10.1007/s40279-015-0320-0
- Schoenfeld BJ, Aragon AA. How much protein can the body use in a single meal for muscle-building? Implications for daily protein distribution. J Int Soc Sports Nutr. 2018;15:10. doi:10.1186/s12970-018-0215-1 PubMed PMID: 29497353; PubMed Central PMCID: PMC5828430.
- Areta JL, Burke LM, Ross ML, Camera DM, West DWD, Broad EM, et al. Timing and distribution of protein ingestion during prolonged recovery from resistance exercise alters myofibrillar protein synthesis. J Physiol. mai 2013;591(9):2319‑31. doi:10.1113/jphysiol.2012.244897
- Margolis LM, Allen JT, Hatch-McChesney A, Pasiakos SM. Coingestion of Carbohydrate and Protein on Muscle Glycogen Synthesis after Exercise: A Meta-analysis. Med Sci Sports Exerc. 1 févr 2021;53(2):384‑93. doi:10.1249/MSS.0000000000002476 PubMed PMID: 32826640; PubMed Central PMCID: PMC7803445.
- Kloby Nielsen LL, Tandrup Lambert MN, Jeppesen PB. The Effect of Ingesting Carbohydrate and Proteins on Athletic Performance: A Systematic Review and Meta-Analysis of Randomized Controlled Trials. Nutrients. 20 mai 2020;12(5):1483. doi:10.3390/nu12051483 PubMed PMID: 32443678; PubMed Central PMCID: PMC7284704.
- Res PT, Groen B, Pennings B, Beelen M, Wallis GA, Gijsen AP, et al. Protein Ingestion before Sleep Improves Postexercise Overnight Recovery. Med Sci Sports Exerc. août 2012;44(8):1560‑9. doi:10.1249/MSS.0b013e31824cc363
- Snijders T, Trommelen J, Kouw IWK, Holwerda AM, Verdijk LB, van Loon LJC. The Impact of Pre-sleep Protein Ingestion on the Skeletal Muscle Adaptive Response to Exercise in Humans: An Update. Front Nutr. 2019;6:17. doi:10.3389/fnut.2019.00017 PubMed PMID: 30895177; PubMed Central PMCID: PMC6415027.
- Van Vliet S, Burd NA, Van Loon LJ. The Skeletal Muscle Anabolic Response to Plant- versus Animal-Based Protein Consumption. J Nutr. sept 2015;145(9):1981‑91. doi:10.3945/jn.114.204305
- Berrazaga I, Micard V, Gueugneau M, Walrand S. The Role of the Anabolic Properties of Plant- versus Animal-Based Protein Sources in Supporting Muscle Mass Maintenance: A Critical Review. Nutrients. 7 août 2019;11(8):1825. doi:10.3390/nu11081825
- Gorissen SHM, Crombag JJR, Senden JMG, Waterval WAH, Bierau J, Verdijk LB, et al. Protein content and amino acid composition of commercially available plant-based protein isolates. Amino Acids. déc 2018;50(12):1685‑95. doi:10.1007/s00726-018-2640-5 PubMed PMID: 30167963; PubMed Central PMCID: PMC6245118.
- Özdemir A, Buyuktuncer Z. Dietary legumes and gut microbiome: a comprehensive review. Crit Rev Food Sci Nutr. 19 oct 2025;65(28):5914‑28. doi:10.1080/10408398.2024.2434725
- Bouchenak M, Lamri-Senhadji M. Nutritional Quality of Legumes, and Their Role in Cardiometabolic Risk Prevention: A Review. J Med Food. mars 2013;16(3):185‑98. doi:10.1089/jmf.2011.0238
- Kahleova H, Levin S, Barnard N. Cardio-Metabolic Benefits of Plant-Based Diets. Nutrients. 9 août 2017;9(8):848. doi:10.3390/nu9080848
- Wang F, Zheng J, Yang B, Jiang J, Fu Y, Li D. Effects of Vegetarian Diets on Blood Lipids: A Systematic Review and Meta‐Analysis of Randomized Controlled Trials. J Am Heart Assoc. 27 oct 2015;4(10):e002408. doi:10.1161/JAHA.115.002408
- McCrory MA, Hamaker BR, Lovejoy JC, Eichelsdoerfer PE. Pulse consumption, satiety, and weight management. Adv Nutr. nov 2010;1(1):17‑30. doi:10.3945/an.110.1006 PubMed PMID: 22043448; PubMed Central PMCID: PMC3042778.
- Sharma K, Zhang W, Rawdkuen S. Dietary Plant-Based Protein Supplements: Sources, Processing, Nutritional Value, and Health Benefits. Foods. 19 sept 2025;14(18):3259. doi:10.3390/foods14183259 PubMed PMID: 41008232; PubMed Central PMCID: PMC12469279.
- Lynch H, Johnston C, Wharton C. Plant-Based Diets: Considerations for Environmental Impact, Protein Quality, and Exercise Performance. Nutrients. 1 déc 2018;10(12):1841. doi:10.3390/nu10121841
- Poore J, Nemecek T. Reducing food’s environmental impacts through producers and consumers. Science. juin 2018;360(6392):987‑92. doi:10.1126/science.aaq0216
- Springmann M, Wiebe K, Mason-D’Croz D, Sulser TB, Rayner M, Scarborough P. Health and nutritional aspects of sustainable diet strategies and their association with environmental impacts: a global modelling analysis with country-level detail. Lancet Planet Health. oct 2018;2(10):e451‑61. doi:10.1016/S2542-5196(18)30206-7
- Fresán U, Sabaté J. Vegetarian Diets: Planetary Health and Its Alignment with Human Health. Adv Nutr. nov 2019;10:S380‑8. doi:10.1093/advances/nmz019
- Boye J, Wijesinha-Bettoni R, Burlingame B. Protein quality evaluation twenty years after the introduction of the protein digestibility corrected amino acid score method. Br J Nutr. août 2012;108(S2):S183‑211. doi:10.1017/S0007114512002309
- Marinangeli CPF, House JD. Potential impact of the digestible indispensable amino acid score as a measure of protein quality on dietary regulations and health. Nutr Rev. 1 août 2017;75(8):658‑67. doi:10.1093/nutrit/nux025
- Sarwar Gilani G, Wu Xiao C, Cockell KA. Impact of Antinutritional Factors in Food Proteins on the Digestibility of Protein and the Bioavailability of Amino Acids and on Protein Quality. Br J Nutr. août 2012;108(S2):S315‑32. doi:10.1017/S0007114512002371
- Schaafsma G. The Protein Digestibility–Corrected Amino Acid Score. J Nutr. juill 2000;130(7):1865S-1867S. doi:10.1093/jn/130.7.1865S
- FAO. Dietary protein quality evaluation in human nutrition. Report of an FAQ Expert Consultation. FAO Food Nutr Pap. 2013;92:1‑66. PubMed PMID: 26369006.
- Witard O, Wardle S, Macnaughton L, Hodgson A, Tipton K. Protein Considerations for Optimising Skeletal Muscle Mass in Healthy Young and Older Adults. Nutrients. 23 mars 2016;8(4):181. doi:10.3390/nu8040181
- Areta JL, Burke LM, Ross ML, Camera DM, West DWD, Broad EM, et al. Timing and distribution of protein ingestion during prolonged recovery from resistance exercise alters myofibrillar protein synthesis. J Physiol. mai 2013;591(9):2319‑31. doi:10.1113/jphysiol.2012.244897
- Schoenfeld BJ, Aragon AA, Krieger JW. The effect of protein timing on muscle strength and hypertrophy: a meta-analysis. J Int Soc Sports Nutr. 3 janv 2013;10(1):53. doi:10.1186/1550-2783-10-53
- Breen L, Phillips SM. Skeletal muscle protein metabolism in the elderly: Interventions to counteract the « anabolic resistance » of ageing. Nutr Metab. 2011;8(1):68. doi:10.1186/1743-7075-8-68
- Sabatini DM. Twenty-five years of mTOR: Uncovering the link from nutrients to growth. Proc Natl Acad Sci. 7 nov 2017;114(45):11818‑25. doi:10.1073/pnas.1716173114
- Wilkinson DJ, Hossain T, Hill DS, Phillips BE, Crossland H, Williams J, et al. Effects of leucine and its metabolite β‐hydroxy‐β‐methylbutyrate on human skeletal muscle protein metabolism. J Physiol. juin 2013;591(11):2911‑23. doi:10.1113/jphysiol.2013.253203
- Børsheim E, Tipton KD, Wolf SE, Wolfe RR. Essential amino acids and muscle protein recovery from resistance exercise. Am J Physiol-Endocrinol Metab. 1 oct 2002;283(4):E648‑57. doi:10.1152/ajpendo.00466.2001
- McLain TA, Escobar KA, Kerksick CM. Protein Applications in Sports Nutrition—Part I: Requirements, Quality, Source, and Optimal Dose. Strength Cond J. avr 2015;37(2):61‑71. doi:10.1519/SSC.0000000000000128
- Ferrando AA, Wolfe RR, Hirsch KR, Church DD, Kviatkovsky SA, Roberts MD, et al. International Society of Sports Nutrition Position Stand: Effects of essential amino acid supplementation on exercise and performance. J Int Soc Sports Nutr. déc 2023;20(1):2263409. doi:10.1080/15502783.2023.2263409 PubMed PMID: 37800468; PubMed Central PMCID: PMC10561576.
- Pasiakos SM, McClung HL, McClung JP, Margolis LM, Andersen NE, Cloutier GJ, et al. Leucine-enriched essential amino acid supplementation during moderate steady state exercise enhances postexercise muscle protein synthesis. Am J Clin Nutr. sept 2011;94(3):809‑18. doi:10.3945/ajcn.111.017061
Autrices:
Myriam POUSSE (Docteure en Pharmacie, Directrice Scientifique)
Reyes RODENAS (Docteure en Pharmacie, Chercheuse Scientifique)
Date: Juillet 2026